Autores: Fernanda Colombini e Thaílla Pacheco
Editor: Prof. Dr. Marco Ataide
O muramil dipeptídeo (MDP) é o motivo estrutural mínimo derivado do peptidoglicano da parede celular bacteriana capaz de manter atividade adjuvante (1) e é reconhecido intracelularmente pelo receptor NOD2 (2). A sinalização por NOD2 também pode modular respostas adaptativas por meio de células apresentadoras de antígeno, especialmente células dendríticas (3). Além disso, variantes de NOD2 estão fortemente associadas à suscetibilidade à doença de Crohn, reforçando a relevância dessa via no contexto da homeostase intestinal (4). Paralelamente, células estromais dos linfonodos, incluindo populações endoteliais, participam ativamente do recrutamento, posicionamento e organização de leucócitos (5). Nesse contexto, Tsankov et al. investigaram se o reconhecimento de MDP por NOD2 no endotélio poderia regular o recrutamento (homing) de células T aos linfonodos mesentéricos (mLNs) e, consequentemente, influenciar a geração de respostas efetoras e de memória no intestino (6).
Em modelos murinos, Tsankov et al. demonstraram que a ativação de NOD2 pelo MDP promove o acúmulo de células T nos mLNs de maneira dependente de NOD2, sem aumento correspondente da proliferação, sugerindo um efeito sobre o recrutamento celular. A análise das populações estromais dos mLNs revelou expressão enriquecida de NOD2 nas células endoteliais sanguíneas (BECs); durante a infecção pelo vírus da coriomeningite linfocítica (LCMV), essas células exibiram um programa transcricional associado ao recrutamento de leucócitos. A ativação de NOD2 potencializou esse programa e, em células endoteliais submetidas a estímulos inflamatórios, o MDP aumentou a expressão de moléculas de adesão, incluindo MAdCAM-1, ICAM-1 e VCAM-1, além quimiocinas como CCL2 e CCL19, favorecendo a adesão e a transmigração de leucócitos. Em animais com deleção de NOD2 especificamente no endotélio, o aumento do homing de células T para os mLNs induzido por MDP foi reduzido, demonstrando a contribuição do NOD2 endotelial para esse processo.
A sinalização por NOD2 também favoreceu o acúmulo de células T CD4⁺ e CD8⁺ específicas para LCMV na lâmina própria do íleo durante a fase efetora da infecção, bem como o estabelecimento de populações de memória intestinal. Para avaliar a proteção conferida por essas células, os animais foram inicialmente infectados com LCMV-Armstrong e, após 30 dias, submetidos a um desafio secundário com LCMV-clone 13 (LCMV-C13). A deficiência global ou endotelial de NOD2 foi associada a respostas de memória intestinal prejudicadas e a maior carga viral no íleo após a reinfecção, indicando a importância dessa sinalização para a proteção local, sem demonstrar um efeito direto sobre a diferenciação das células T. Por fim, a depleção da microbiota intestinal com antibióticos reduziu a expressão de moléculas de adesão e o número de células T específicas para LCMV. A administração exógena de MDP restaurou a expressão dessas moléculas e promoveu recuperação parcial da resposta de células T no intestino, incluindo o aumento de células T CD8⁺ totais e de células T CD4⁺ e CD8⁺ antígeno-específicas na lâmina própria ileal, sem recuperação equivalente no baço.
Em conjunto, os resultados indicam que as BECs constituem um elo entre sinais derivados da microbiota e a resposta adaptativa intestinal. O reconhecimento de MDP por NOD2 nessas células induz um programa de recrutamento leucocitário, com destaque para MAdCAM-1, favorecendo o homing de células T aos mLNs. Na nossa leitura, a principal contribuição do estudo é mostrar que a disponibilidade de células T para a resposta intestinal também depende da capacidade do endotélio de responder a sinais microbianos. Isso amplia a compreensão da ação adjuvante do MDP ao relacioná-la à regulação do acesso de linfócitos aos locais onde a resposta é iniciada (6).
Essa interpretação, entretanto, requer distinguir o recrutamento de células T da regulação direta de sua diferenciação. O aumento de células efetoras e de memória pode refletir, ao menos em parte, o maior número de precursores recrutados aos mLNs; não demonstra, por si só, que NOD2 endotelial instrua o destino dessas células. Da mesma forma, a recuperação de respostas após MDP em animais tratados com antibióticos sustenta a participação de sinais bacterianos, mas não identifica sua fonte ou disponibilidade no contexto fisiológico. Esses pontos delimitam o mecanismo proposto e orientam perguntas para estudos futuros.
A associação entre variantes de NOD2 e doença de Crohn torna relevante investigar se alterações dessa via no endotélio comprometem a resposta intestinal em humanos. Os resultados discutidos, porém, não estabelecem esse mecanismo na doença nem permitem concluir que estimular NOD2 teria benefício terapêutico. O avanço conceitual está em incluir a resposta endotelial aos sinais microbianos entre os fatores que organizam o recrutamento de células T e a imunidade intestinal.
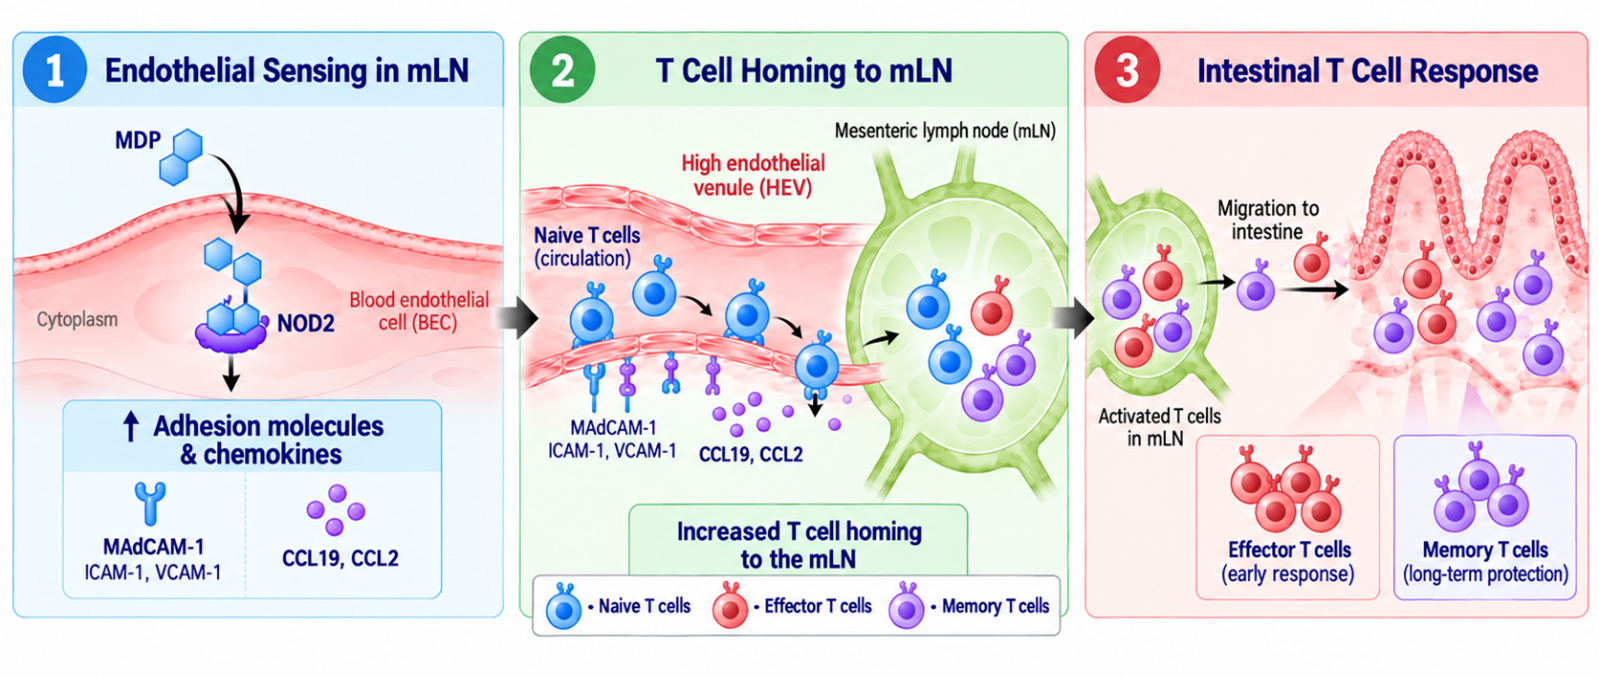
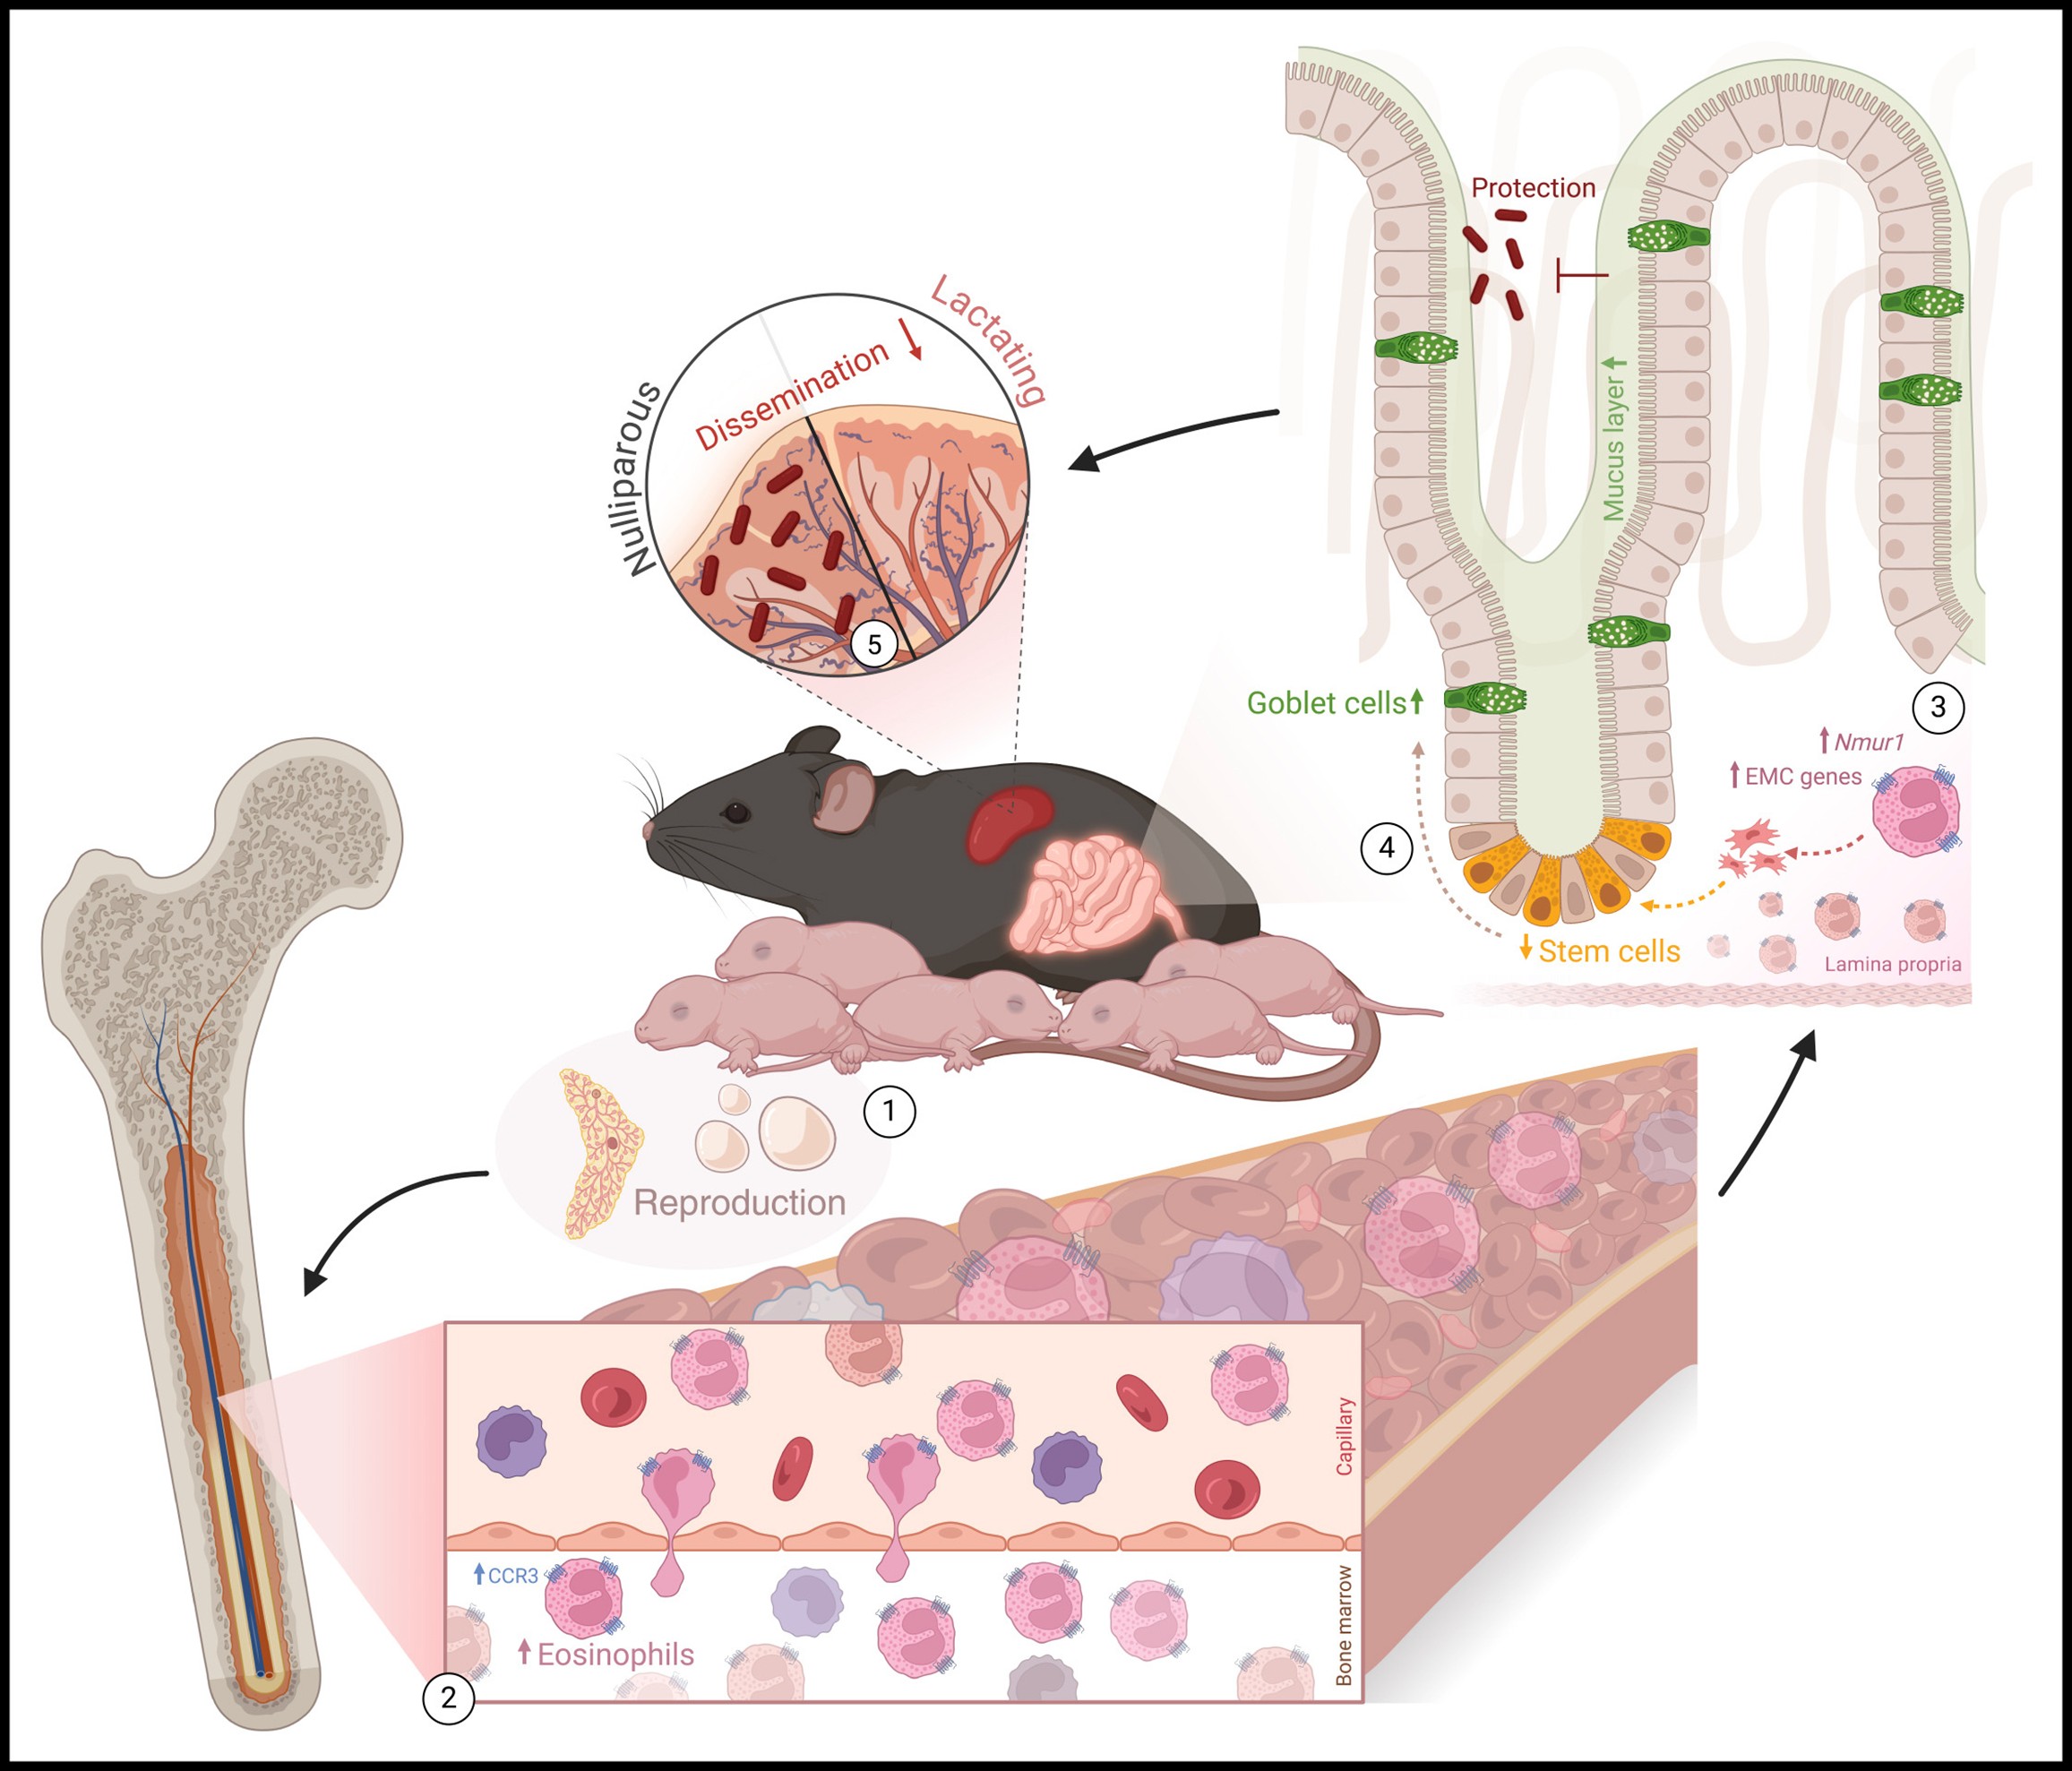
Figura 1. Modelo proposto para a regulação da resposta de células T intestinais pela sinalização endotelial de NOD2. O reconhecimento de MDP por NOD2 nas BECs favorece um programa associado ao recrutamento leucocitário, com aumento de moléculas de adesão, incluindo MAdCAM-1, e de quimiocinas. Nos modelos estudados, essa resposta favorece o homing de células T para os mLNs e contribui para o estabelecimento de respostas efetoras e de memória no intestino. Imagem criada por OpenAI (2026), com base nos resultados de Tsankov et al. (6).
Referências
- Ellouz F, Adam A, Ciorbaru R, Lederer E. Minimal structural requirements for adjuvant activity of bacterial peptidoglycan derivatives. Biochem Biophys Res Commun. 1974;59(4):1317-1325. doi:10.1016/0006-291X(74)90458-6.
- Girardin SE, Boneca IG, Viala J, Chamaillard M, Labigne A, Thomas G, et al. NOD2 is a general sensor of peptidoglycan through muramyl dipeptide (MDP) detection. J Biol Chem. 2003;278(11):8869-8872. doi:10.1074/jbc.C200651200.
- van Beelen AJ, Zelinkova Z, Taanman-Kueter EW, Muller FJ, Hommes DW, Zaat SA, et al. Stimulation of the intracellular bacterial sensor NOD2 programs dendritic cells to promote interleukin-17 production in human memory T cells. 2007;27(4):660-669. doi:10.1016/j.immuni.2007.08.013.
- Hugot JP, Chamaillard M, Zouali H, Lesage S, Cezard JP, Belaiche J, et al. Association of NOD2 leucine-rich repeat variants with susceptibility to Crohn's disease. 2001;411(6837):599-603. doi:10.1038/35079107.
- Krishnamurty AT, Turley SJ. Lymph node stromal cells: cartographers of the immune system. Nat Immunol. 2020;21(4):369-380. doi:10.1038/s41590-020-0635-3.
- Tsankov BK, Denney M, Ahn JSY, Carr C, Nathan N, Tsang DKL, et al. Endothelial cell-intrinsic NOD2 signaling regulates the intestinal immune response through the generation of effector and memory T cells. Nat Immunol. 2026;27(9):1930-1941. doi:10.1038/s41590-026-02595-3.



- Apaixonados por Imunologia
- Comunicado
- Conteúdo Publicitário
- Curso
- Dept. Imunologia Clínica
- Dia da Imunologia
- Dia Internacional da Imunologia
- Divulgação científica
- Edital
- Especial
- Especial Dia da Imunologia
- Especial Doença de Chagas
- Evento
- Eventos
- Exposição COVID-19 da SBI
- História da Imunologia no Brasil
- Homenagem
- Immuno 2018
- Immuno2019
- Immuno2021
- Immuno2022
- Immuno2023
- Immuno2025
- Immuno2026
- Immuno2027
- IMMUNOLAC
- Immunometabolism2022
- Imune
- Imune - o podcast da SBI
- ImunoWebinar
- INCT Imuno
- Institucional
- IUIS
- Luto
- NeuroImmunology 2024
- Nota
- Nota Técnica
- Notícia
- o podcast da SBI
- Oportunidades
- Outros
- Parecer Científico
- Pesquisa
- Pint of Science 2019
- Pint of Science 2020
- Política Científica
- Sars-CoV-2
- SBI 50 ANOS
- SBI.ImunoTalks
- Sem categoria
- Simpósio
- SNCT 2020
- SNCT 2022
- Webinar
- WORKSHOP